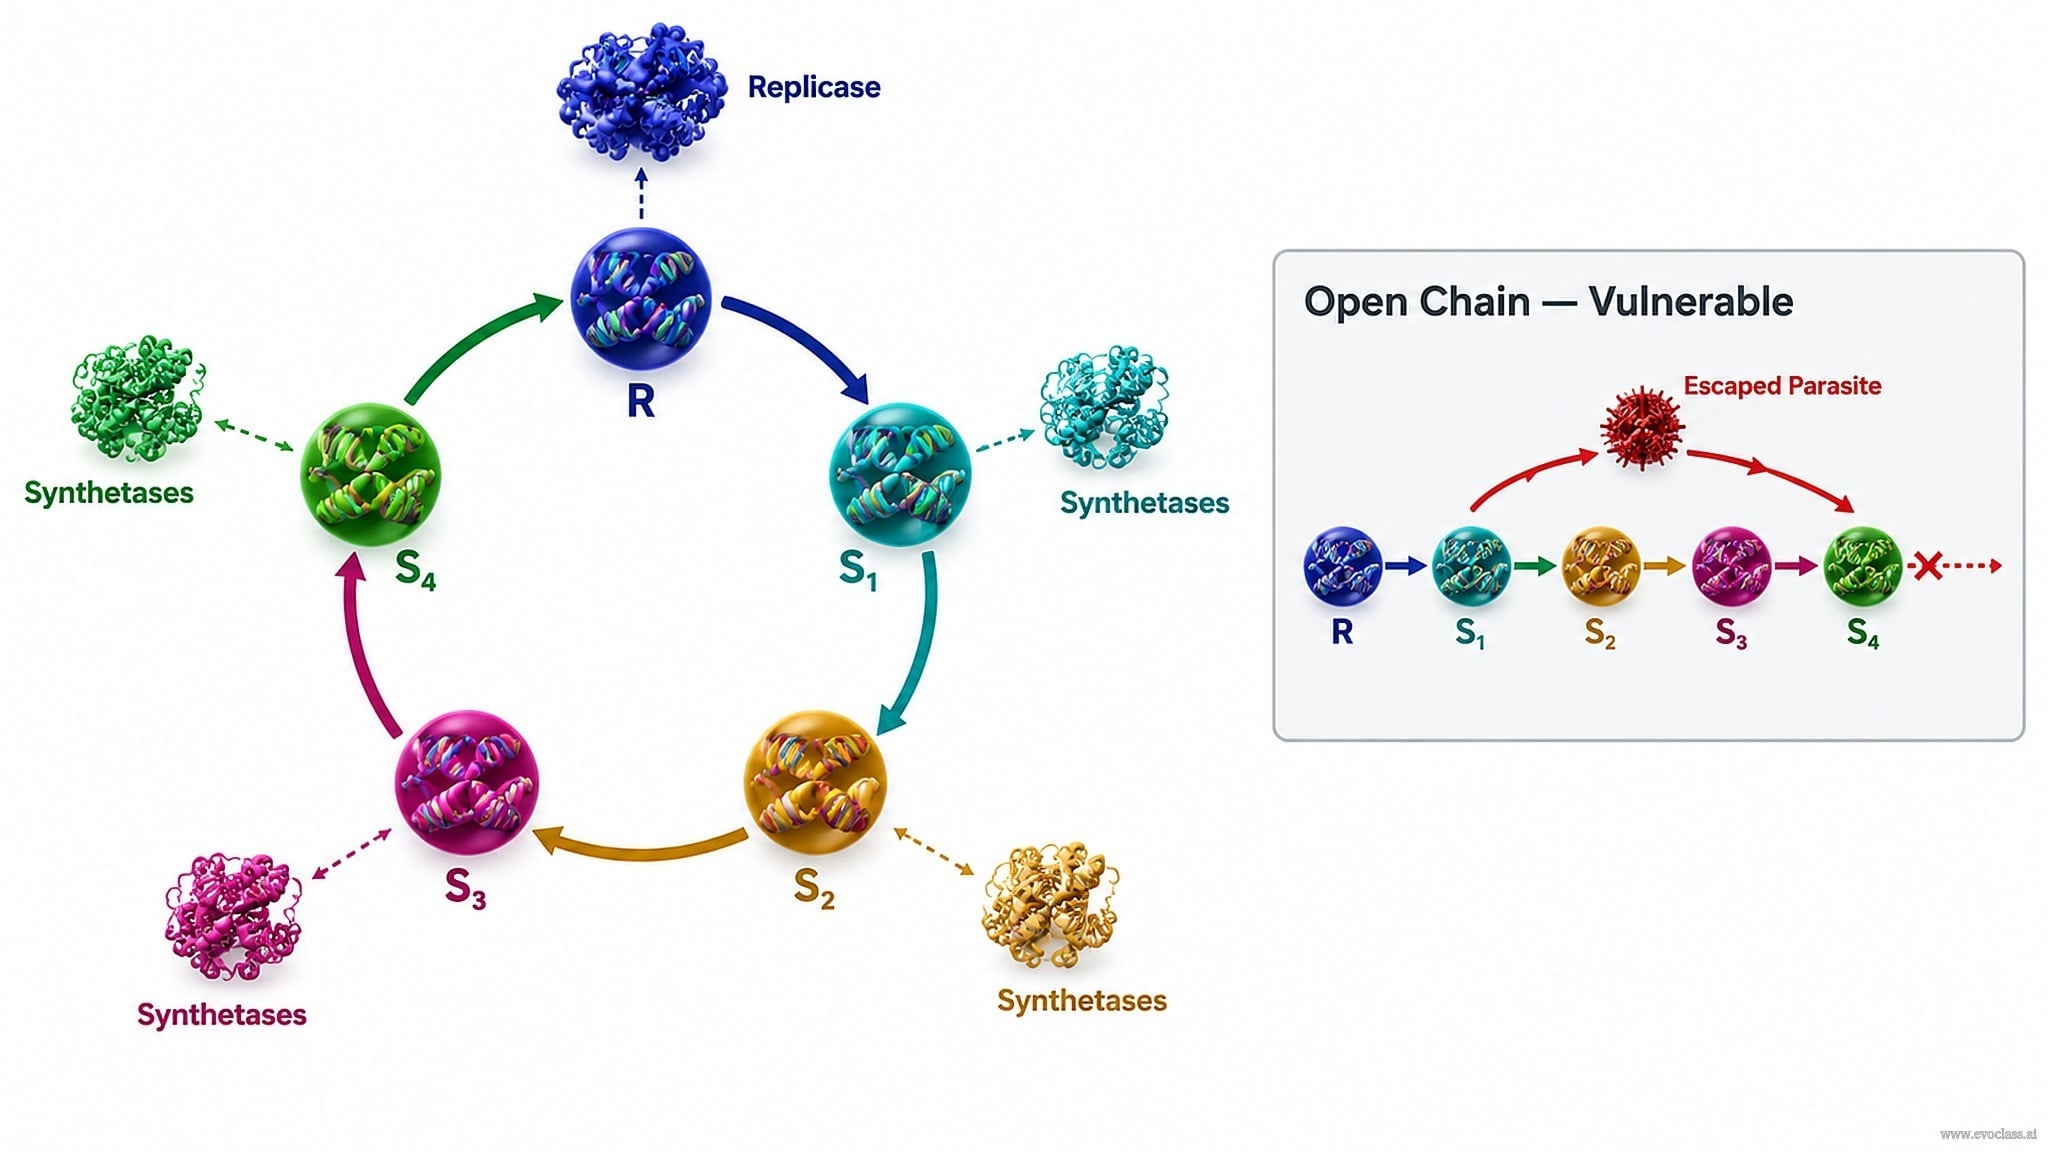
このスライドは、抽象的なハイパーサイクル動力学を、原始的な分子シナリオという具体的な場面に結びつけます。すなわち、RNAハイパーサイクルとして組織された原始的な複製・翻訳装置です。最小構成のスキームでは、1つのレプリカーゼと4つのシンテターゼ機能をコードするRNA鎖を用います。RNAは鋳型/メッセージとしても、触媒/適応分子としても働き、コードされたタンパク質は複製と原始的なペプチド合成を触媒します。
共通の複製項と翻訳項は1つの増殖関数にまとめることができ、ハイパーサイクル方程式で統合されたRNA–タンパク質系を記述できるようになります。しかし、これらの機能をコードしているだけでは不十分です。RNAが独立したまま、あるいは線形的にしか結合していなければ、より速く増える変異体や寄生体が共有された触媒を利用でき、メッセンジャー全体の集合は内部競争によって劣化していきます。
メッセンジャー集合が依然として劣化する理由
1つのレプリカーゼと4つのシンテターゼをコードするメッセンジャー集合は、翻訳産物が拡散性の公共財である場合、自動的に安定化するわけではありません。より速く複製するRNAや寄生体は、すべての機能を提供することなくレプリカーゼやシンテターゼを利用できます。集合が最初は増殖しても、変異体の負荷と選択が協力的な集合を侵食します。
どのような結合がそれを安定化するか
安定した統合には、閉じた循環的な触媒結合が必要であり、各成員の産物が他の成員の複製や発現を助けます。この相互依存が寄生体を抑え、複製と翻訳を統合します。増殖は個々の鋳型の性質ではなく、集合全体の性質となります。
学習目標
レプリカーゼと4つのシンテターゼ機能をコードするメッセンジャー集合が依然として劣化する理由を説明し、それを安定化させる結合の種類を述べよ。
補足ノート
原始コードパターンのRRY(プリン–プリン–ピリミジン)とRNY(プリン–任意–ピリミジン)はいずれも3番目にピリミジンを置き、フレーム外のトリプレットを減らすことでコンマなしの読み取りを助けます。RRYはより制約が強く、プラス/マイナス鎖の相補性は常に対称とは限らず、内部フォールディングが読み取り枠を遮ることがあります。RNYは制約が弱く変異変化により寛容ですが、フレーム外の対合をより多く許す可能性があります。どちらのパターンも、アミノアシル化されたtRNA様アダプターによって原始メッセージがどれほど再現性よく読まれるかに影響します。
原始的なRNA–タンパク質ハイパーサイクル5つのRNAノードが1つのレプリカーゼ(R)と4つのシンテターゼ(S 1 –S 4)をコードします。破線の矢印は拡散性タンパク質の翻訳を示し、実線の曲線矢印は閉じた触媒結合を示します。ここでは各産物が他の成員の発現や複製を助けます。開放/線形の版ではこの閉鎖性が欠けており、寄生体に対して脆弱です。
原始的なRNA–タンパク質ハイパーサイクル
5つのRNAノードが1つのレプリカーゼ(R)と4つのシンテターゼ(S 1 –S 4)をコードします。破線の矢印は拡散性タンパク質の翻訳を示し、実線の曲線矢印は閉じた触媒結合を示します。ここでは各産物が他の成員の発現や複製を助けます。開放/線形の版ではこの閉鎖性が欠けており、寄生体に対して脆弱です。